Kambo Reinigung - der reinigende Effekt der Peptide
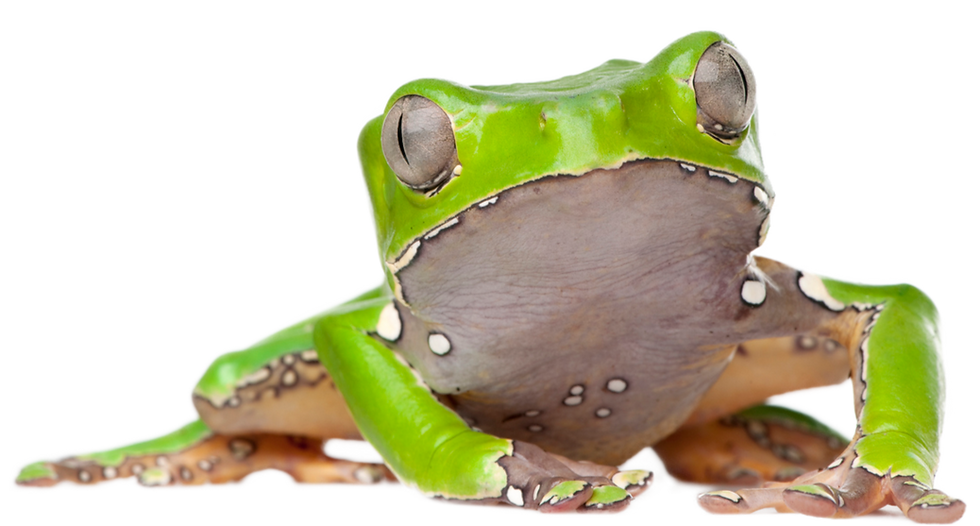
Tief im Amazonasbecken gilt der Riesenmakifrosch (Phyllomedusa bicolor) seit Jahrtausenden als großer Lehrer und Hüter des Lebens. Kambo ist ein heiliges Geschenk des Waldes, das den Menschen hilft, in einer anspruchsvollen Umwelt zu bestehen.
Kambo gilt als „Jagdmedizin", die Müdigkeit und Pech (panema) aus dem Körper nimmt, die Sinne schärft und den Jägern Stärke, Ausdauer und Treffsicherheit verleiht.
Kambo wird in den Dorfgemeinschaften eingesetzt, um Krankheiten vorzubeugen, das Immunsystem zu stärken und um energetische Blockaden zu lösen.
Es wird als Reinigungsritual verstanden, das den Menschen wieder in Balance mit sich selbst und der Natur bringen soll.
Der Frosch wird dabei mit großem Respekt behandelt: Er wird gefangen, „besungen", sanft gestreichelt, um die Sekretabgabe anzuregen, und unverletzt in den Dschungel zurückgesetzt.
Hinter diesem Mysterium verbirgt sich ein biochemisches Meisterwerk [1]. In unserem Körper steuern hochkomplexe, bioaktive Peptide den Rhythmus der Natur. Gelangen sie in das menschliche System, wirken sie auf zellulärer Ebene wie maßgeschneiderte Schlüssel: Als Regisseure des Lebens besetzen sie gezielt spezifische Rezeptoren, begleiten unsere inneren Prozesse und kalibrieren unsere Energie im Einklang mit der ursprünglichen Ordnung [2].
Es grenzt an Magie, dass bereits kleinste Mengen dieser Aminosäureketten genügen, um tiefste physiologische Regelkreise zu harmonisieren. Es ist ein heiliger Tanz der Moleküle, der die Brücke schlägt zwischen dem uralten Wissen und der modernen Wissenschaft.
Tauchen wir nun tiefer ein in die biochemischen Mechanismen hinter diesem Wirken…
DIE PEPTIDE IM DETAIL
Sieben Botenstoffe - eine natürliche Synergie
Jedes dieser Peptide spielt eine tragende Rolle im Erneurungsprozeß. Gemeinsam entfalten sie eine präzise Choreografie, die auf Reinigung, ganzheitliche Unterstützung und mentale Fokussierung ausgerichtet ist.
01 - der metabolische flush
Phyllomedusin & Phyllokinin
Diese Peptide regulieren die Gefäßweite und Drüsenaktivität [3]. Phyllokinin setzt über das Endothel Stickstoffmonoxid (NO) frei, was die Gefäßmuskulatur entspannt und die Adern weitet [4, 5]. Phyllomedusin ergänzt dies durch eine erhöhte Gefäßdurchlässigkeit und aktiviert die Schweiß-, Tränen- und Speicheldrüsen [6].
Dieser metabolische „Flush“ ermöglicht eine intensive Gewebereinigung [7]. Über die gesteigerte Sekretion werden Stoffwechselprodukte und Salze effizient ausgeleitet [8], während die anschließende Normalisierung der Gefäße die Mikrozirkulation sowie die Sauerstoffversorgung der Zellen optimiert [9].
02 - das kognitive update
Adenoregulin
Adenoregulin greift in das Energiemanagement des Gehirns ein, indem es mit den Adenosin-Rezeptoren interagiert [10]. Adenosin ist der körpereigene Stoff, der normalerweise die Müdigkeit signalisiert. Adenoregulin besetzt diese Stellen und moduliert, wie empfindlich die Nervenzellen auf diese Signale reagieren [11]. Es greift somit direkt in die Steuerung von Wachheit und Aufmerksamkeit ein.
Dieser Eingriff bewirkt nach der anstrengenden Reinigungsphase eine Neujustierung des „Wachheits-Schalters“ [12]. Die Modifikation der Müdigkeitssignale führt zu einer oft beobachteten gesteigerten geistigen Klarheit [13]. Es wirkt wie ein biochemisches Update für die kognitive Belastbarkeit und die neuronale Wachsamkeit [14].
03 - Der hormonelle Neustart
Sauvagin
Wenn Kambo aufgetragen wird, spüren viele sofort eine innere Hitze, Unruhe und das Gefühl, dass der Körper hochfährt. Dafür sorgt Sauvagin.
Ein Peptid, das die Wirkung des menschlichen Stresshormons CRH imitiert [15]. Es aktiviert die zentrale Stressachse des Körpers, indem es der Hirnanhangdrüse signalisiert, dass eine Bedrohung vorliegt [16]. Dies regt das System zur Ausschüttung von Botenstoffen an, die in der Nebenniere die Produktion von Adrenalin und Cortisol hochfahren [17].
Dieser Zustand ermöglicht eine Neukalibrierung des Nervensystems [18]. Wie ein Pendel, das weit ausgeschlagen hat, schwingt das System nach der Belastung tief in den Ruhemodus zurück, was chronische Anspannung lösen kann [19]. Zudem wirkt die Cortisolausschüttung wie ein körpereigener Feuerlöscher, der Entzündungsprozesse im Gewebe kurzzeitig unterdrückt [20].
04 - Die intelligente Immun-Abwehr
Dermaseptine
Dermaseptine kommunizieren nicht mit unseren Zellen, sondern dienen als physikalische Abwehr gegen Eindringlinge [21]. Da die Hüllen vieler Bakterien und Pilze elektrisch negativ geladen sind, werden die Dermaseptine von ihnen angezogen [22]. Sie lagern sich wie winzige Nadeln an die Zellwand des Erregers an, wodurch sie regelrechte Löcher in den Mikroorganismus bohren [23].
Das verursacht eine physikalische Eliminierung von Krankheitserregern [24]. Da die Bakterien nicht chemisch vergiftet werden, sondern ihre Hülle mechanisch zerstört wird, wirkt dieser Mechanismus im Labor auch gegen Keime, die gegen herkömmliche Antibiotika resistent sind [25]. Es stellt eine hochwirksame erste Verteidigungslinie dar, die die Erreger zerfallen lässt, ohne die menschlichen Zellen anzugreifen [26].
05 - die neuronale stille
Dermorphin & Deltorphin
Sie sind chemisch gesehen fast wie eine Kopie unserer Endorphine – unserer körpereigenen Opioide [27]. Pflanzliche Opiate (wie aus dem Schlafmohn) nutzen zwar dieselben zellulären „Schlösser“, sind aber chemisch völlig anders aufgebaut [28]. Sie besetzen dauerhaft das Schloss oft oder verändern die Zelle langfristig, was das hohe Suchtpotenzial erklärt. Die Frosch-Peptide hingegen verhalten sich viel eher wie die körpereigenen Endorphine [29]. Wenn sie andocken, verändern sie die elektrische Ladung der Nervenzelle so, dass diese weniger Schmerzsignale weiterleiten [30].
Daraus resultieren eine Dämpfung des Schmerzempfindens und eine emotionale Stabilisierung [31]. Da sie biochemisch jedoch vollkommen anders aufgebaut sind als Opiate, modulieren sie den Schmerz, ohne dabei das Belohnungssystem des Gehirns so verändern, dass eine Abhängigkeit induziert wird oder die Atmung gefährlich verflacht [32]. Es entsteht ein Zustand erhöhter Belastbarkeit und mentaler Ruhe [33].
06 - Die Welle der Klärung
Phyllocaerulein
Phyllocaerulein gehört zur Gruppe der Neuropeptide und ist ein enger Verwandter des körpereigenen Botenstoffs Cholecystokinin (CCK) [34]. Auf zellulärer Ebene bindet es an die CCK-Rezeptoren, die sich in der glatten Muskulatur des Magens, des Darms und der Gallenblase befinden. Diese Bindung löst eine Signalkette aus, die dazu führt, dass die Muskelzellen Calcium aus ihren internen Speichern freisetzen [35]. Calcium ist das universelle Signal für Muskelzellen, sich kräftig zusammenzuziehen. Dies führt zu wellenartigen Kontraktionen des Verdauungstraktes [36].
Dieser Mechanismus regt eine mechanische Reinigung des Systems an [37]. Durch die synchronisierte Kontraktion wird der Mageninhalt entleert und die Gallenblase zur Abgabe von Galle angeregt, was einen beschleunigten Austausch von Verdauungssäften bewirkt [38]. Zudem beeinflusst das Peptid über Rezeptoren im Gehirn die Sättigungssignale, was eine Neukalibrierung des Appetitzentrums begünstigen kann [39].
07 - Der Katalysator der Tiefenreinigung
Bombesine
Diese Molekülgruppe bindet an spezifische Bombesin-Rezeptoren (wie den GRP-Rezeptor), die stark im Magen-Darm-Trakt sowie im zentralen Nervensystem vertreten sind [40]. Während Phyllocaerulein primär den Befehl zur Muskelkontraktion gibt, agieren die Bombesine eine Ebene darüber: Wenn sie andocken, zwingen sie den Magen und die Bauchspeicheldrüse dazu, Magensäure, Gastrin und andere Verdauungsenzyme in den Magenraum abzugeben [41]. Gleichzeitig senden sie Signale an den Hypothalamus im Gehirn, welcher das interne Thermostat unseres Körpers steuert [42].
Dieser Mechanismus sorgt für die chemische Vorbereitung der körperlichen Entleerung [43]. Der Magen wird nicht nur mechanisch kontrahiert, sondern zuvor mit Verdauungssäften geflutet, was das Erbrechen biochemisch erst ermöglicht [44]. Zudem erklärt der Eingriff in die Thermoregulation die oft beschriebenen Wärmewallungen und das darauf folgende Frösteln, das manche wahrnehmen [45].
Zur richtigen Einordnung:
Es handelt sich im hierbei um Erklärungen, die primär auf Laborstudien beruhen und sich nicht immer eins zu eins auf den lebenden Organismus übertragen lassen. Sie dienen rein dem wissenschaftlichen Verständnis der Mechanismen und stellen keine Heilversprechen dar.
Quellenverweis
-
Erspamer, V., et al. (1993). Pharmacological studies of sap from Phyllomedusa bicolor.
-
Lacombe, C., et al. (2014). Bioactive peptides from amphibian skin: A review.
-
Erspamer, V. (1984). Amphibian skin peptides: An immense reservoir of biologically active compounds.
-
Regoli, D., et al. (1994). Pharmacology of bradykinin and related peptides.
-
Palmer, R. M., et al. (1987). Nitric oxide release accounts for biological activity.
-
Erspamer, V., et al. (1964). The isolation and amino acid sequence of phyllomedusin.
-
Moncada, S., et al. (1991). Nitric oxide: Physiology and pharmacology.
-
Ignarro, L. J. (1990). Biosynthesis and metabolism of endothelium-derived nitric oxide.
-
Vallance, P., et al. (1989). Endothelium-derived nitric oxide and blood pressure.
-
Daly, J. W., et al. (1992). Adenoregulin: A potent new adenosine receptor modulator.
-
Amiche, M., et al. (1994). Dermorphin-related peptides from Phyllomedusa bicolor.
-
Fredholm, B. B. (1995). Adenosine, adenosine receptors and caffeine.
-
Jacobson, K. A., et al. (1996). Adenosine receptors as therapeutic targets.
-
Daly, J. W. (1982). Adenosine receptors: Targets for future drugs.
-
Montecucchi, P. C., et al. (1979). Isolation and amino acid sequence of sauvagine.
-
Vale, W., et al. (1981). Characterization of a 41-residue ovine hypothalamic peptide.
-
Erspamer, V., et al. (1980). Sauvagine, a new polypeptide.
-
Dieterich, K. D., et al. (1996). Corticotropin-releasing hormone receptors.
-
Koob, G. F., et al. (1985). Corticotropin-releasing factor and behavior.
-
Heinrichs, S. C., et al. (1995). Anti-inflammatory effects of CRH-like peptides.
21. Mor, A., et al. (1991). Isolation and characterization of dermaseptins.
22. Amiche, M., et al. (1999). The dermaseptin precursors.
23. Zasloff, M. (2002). Antimicrobial peptides of multicellular organisms.
24. Hancock, R. E., et al. (1998). Peptide antibiotics.
25. Mor, A. (2000). Peptide-membrane interactions.
26. Feder, R., et al. (2000). Structure-activity relationships of dermaseptin.
27. Montecucchi, P. C., et al. (1981). Structure of dermorphin, a novel opiate-like peptide.
28. Melchiorri, P., et al. (1996). The dermorphin peptide family.
29. Kreil, G. (1994). D-amino acids in animal peptides.
30. Erspamer, V., et al. (1989). Deltorphins: A family of naturally occurring peptides.
31. Negri, L., et al. (1992). Pharmacological profile of deltorphins.
32. Broccardo, M., et al. (1981). Antinociceptive activity of dermorphin.
33. Rossi, G. C., et al. (1996). Opioid peptide receptor mechanisms.
34. Erspamer, V. (1970). Progress in Caerulein research.
35. Anastasi, A., et al. (1967). Isolation and structure of phyllocaerulein.
36. Negri, L., et al. (1995). Effects of phyllocaerulein on smooth muscle contraction.
37. Bertaccini, G. (1976). Peptides of the amphibian skin active on the gut.
38. Erspamer, V., et al. (1981). Action of caerulein-like peptides on the gallbladder.
39. Gibbs, J., et al. (1973). Cholecystokinin decreases food intake in rats.
40. Erspamer, V., et al. (1971). Isolation and amino acid sequence of bombesin.
41. Jensen, R. T., et al. (1984). Action of bombesin on the gastrointestinal tract.
42. Brown, M., et al. (1977). Bombesin: Central nervous system action.
43. Walsh, J. H. (1988). Peptides as regulators of gastric acid secretion.
44. Scarpignato, C., et al. (1980). Effect of bombesin on gastric emptying.
45. Tache, Y., et al. (1980). Bombesin: Central nervous system action.